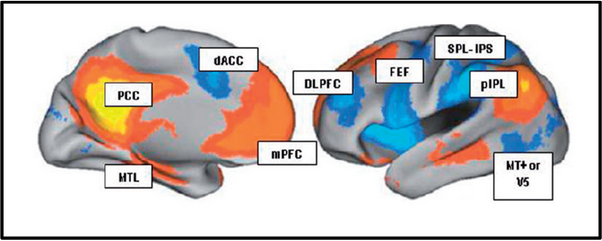
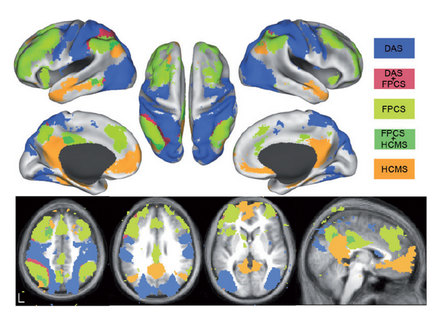
Figura 3 - Interconexões entre a default mode network (laranja) e o sistema atencional. O sistema atencional pode ser decomposto em dois subsistemas:um sistema atencional dorsal (azul) e um sistema atencional ventral ou sistema da saliência (laranja). O sistema atencional dorsal também é conhecido como função executiva fria e o sistema da saliência também é conhecido como função executiva quente. O sistema da saliência regula, de forma bottom-up, o fluxo da atenção para o ambiente interno ou externo, mas a default mode network situa-se no topo da hierarquia, regulando o foco de forma top-down (cf. Carhart-Harris & Friston, 2010).
A DMN apresenta um desenvolvimento notável ao longo da vida. A conectividade entre PFC medial e cíngulo posterior está ausente em recém-nascidos. A DMN desenvolve-se em paralelo ao surgimento das funções do ego. A conectividade entre o PFC medial e o lobo temporal medial aumenta significativamente na puberdade.. A conectividade da DMN atinge seu ápice na idade adulta jovem, declinando com o envelhecimento e com diversas formas de psicopatologia.
Por eemplo, estudos em esquizofrenia mostram que a conectividade entre PFC medial e amígdala está reduzida. Existe ainda uma relação inversa entre conectividade e agressividade em pacientes esquizofrênicos A extinção emocional, por sua vez, ocorre por meio de projeções glutamatérgicas do PFC medial para interneurônios inibitórios no lobo temporal medial. Além disso, a ativação do cíngulo anterior rostral pode inibir a amígdala diante de estímulos de medo. Tais achados indicam que déficits de regulação top-down da DMN sobre estruturas límbicas contribuem para sintomas emocionais e cognitivos da esquizofrenia.
Ampla evidência clínica e pré-clínica demonstra que o mPFC exerce função inibitória sobre circuitos límbicos, modulando a intensidade e a expressão de respostas emocionais. Em estados de emoção intensa e pensamento primitivo, observa-se redução da atividade do mPFC e aumento da atividade nos lobos temporais mediais (MTL). A supressão desses estados associa-se ao aumento da ativação do mPFC.
No TEPT, por exemplo, a recordação de memórias e emoções angustiantes associa-se a diminuição do mPFC e aumento do MTL e o bloqueio ou inibição dessas memórias associa-se a aumento da atividade do mPFC.
Lesões no córtex pré-frontal ventromedial (vmPFC) resultam em déficits no controle de impulsos, indicando sua função crucial para a regulação executiva e emocional.
O mPFC projeta-se densamente para o estriado ventral e para o mesencéfalo. O estriado ventral conecta-se funcionalmente ao mesencéfalo, ao lobo temporal medial e a nós superiores da DMN. Mesencéfalo e estriado ventral, por sua vez, estão implicados na codificação de erro de predição e saliência motivacional, integrando mecanismos de inferência hierárquica com a regulação da motivação e da emoção (Carhart-Harris & Friston, 2010).
O funcionamento da DMN pode ser assim caracterizado: De um modo geral, a DMN inclui nós corticais no topo da hierarquia,c omo o mPFC, troca sinais com sistemas subcorticais e córtices associativos/polimodais, em especial os relacionados a aprendizado emocional e memória. A ativação da DMN tende a suprimir a atividade de sistemas hierarquicamente inferiores. O funcionamento da DMN alinha-se ao modelo de inferência hierárquica e ao processo secundário, entendido como o controle top-down do ego sobre sistemas emocionais inferiores. Assim, mPFC e DMN exercem controle sobre circuitos límbicos e de saliência: quando esse controle aumenta, observa-se regulação emocional; quando diminui, emergem respostas emocionais intensas e pensamento primitivo.
MODELO TEÓRICO DO MODO DEFAULT
Segundo Freud, o ego modula tanto a excitação endógena quanto a exógena. Em condições patológicas ou não ordinárias, como na psicose aguda, na aura da epilepsia do lobo temporal e em estados alucinógenos, observam-se perturbações em múltiplos domínios: afetivos (como o medo), mnêmicos (déjà vu, lembranças vívidas), perceptivos (alucinações) e cognitivos (pensamento confuso).
A cognição adulta saudável depende de um equilíbrio dinâmico entre as forças do processo primário (id) e do processo secundário (ego), de modo que a energia livre da excitação endógena seja contida e organizada pela atividade regulatória do ego.
O modelo freudiano encontra notável convergência com os atuais modelos de inferência bayesiana hierárquica e com o princípio da energia livre (Helmholtz/Friston). Nas arquiteturas hierárquicas do cérebro, as conexões top-down de áreas superiores minimizam a energia livre — isto é, os erros de predição — em níveis inferiores, conferindo estabilidade ao funcionamento psíquico e cognitivo.
A arquitetura neurocognitiva do cérebro ilustra esse modelo. As conexões feedforward originam-se em camadas supragranulares e terminam na camada 4 (células espinhosas estreladas). Elas conduzem informação de níveis mais baixos para níveis mais altos, como no trajeto do tálamo → córtex sensorial primário. Já as conexões de feedback são mais abundantes e difusas, com efeito sobretudo modulatório. Elas se originam em piramidais profundas (infragranulares) e atingem as camadas infra- e supragranulares de áreas inferiores. Esse arranjo anatômico garante que a informação sensorial ascenda aos níveis superiores, enquanto as previsões descendentes organizam e inibem a excitação, mantendo a coerência hierárquica .
Do ponto de vista computacional, o funcionamento do cérebro pode ser descrito em termos de interação entre mecanismos feedforward e feedback. O feedforward fornece erros de predição para otimizar representações em níveis superiores. O feedback fornece predições que suprimem ou cancelam esses erros (energia livre), via interneurônios inibitórios. Quando as predições explicam as representações do nível inferior, o erro é minimizado e há consistência interna entre os níveis hierárquicos. A finalidade adaptativa desse processo é otimizar explicações parcimoniosas das causas dos estímulos e estabelecer predições sensoriais que orientem a ação e o comportamento.
Esse esquema, amplamente sustentado por evidência empírica, recapitula a formulação freudiana do princípio da constância: manter a excitação dentro de limites aceitáveis por meio da regulação top-down do ego.
Freud inspirou-se em Gustav Fechner, fundador da psicofísica e contemporâneo de Helmholtz. O princípio freudiano de minimizar “quantidades de excitação” corresponde, em termos modernos, à minimização do erro de predição ou energia livre em modelos helmholtzeanos.
O pressuposto é que o cérebro codifica erro de predição na própria atividade neuronal (excitação), a qual é suprimida ou explicada por conexões retrógradas (top-down). Freud formulou esse ponto de forma clara:
“[Nós] adotamos a visão de que o princípio que governa todos os processos mentais é um caso especial da ‘tendência para a estabilidade’ de Fechner e, portanto, atribuímos ao aparelho psíquico o propósito de reduzir a nada, ou ao menos manter o mais baixo possível, as quantidades de excitação que nele afluem (Freud, 1924)”.
Essa formulação evidencia a proximidade entre a teoria freudiana da energia psíquica e a formulação moderna da energia livre. Freud propôs que o ego modula e suprime sinais exógenos e endógenos. Os sinais exógenos correspondem a informações interoceptivas e exteroceptivas, transmitidas do tálamo e das áreas sensoriais unimodais para estruturas polimodais e temporais mediais.
Os sinais endógenos podem ser entendidos como erros de predição vindos de sistemas límbicos e paralímbicos, transmitidos para áreas corticais polimodais de alto nível — os principais nós da DMN.
Os princípios de inferência hierárquica de Helmholtz, aplicados a toda a arquitetura cerebral, descrevem esse equilíbrio entre a atividade ascendente dos sistemas inferiores e a atividade descendente dos sistemas superiores. Na perspectiva contemporânea, a default mode network (DMN) desempenha papel crucial nesse processo, com ênfase na supressão pré-frontal medial da atividade límbica e paralímbica. Essa função se associa diretamente ao papel do ego em suprimir a atividade endógena, estabelecendo um paralelo entre o processo secundário freudiano e o controle top-down da DMN.
SISTEMAS HIERÁRQUICOS
Estudos de conectividade funcional têm demonstrado que a Default Mode Network (DMN) apresenta uma relação inversa com o sistema atencional. Observa-se um verdadeiro trade-off entre a ativação da DMN e a ativação do sistema de atenção. Enquanto a DMN é tipicamente ativada durante estados de cognição interna — associados a devaneio, memória autobiográfica e autorreferência —, o sistema atencional mostra-se ativo durante a cognição externa, quando o foco é dirigido ao ambiente e às demandas perceptivas e motoras externas.
O sistema atencional compreende um conjunto de regiões corticais que inclui o córtex pré-frontal dorsolateral, o cíngulo anterior dorsal, os campos oculares frontais, o córtex extraestriado (V5), o lóbulo parietal superior, o sulco intraparietal e o córtex pré-motor ventral. Suas principais funções envolvem a detecção de alvos, a atenção a detalhes espaciais e a coordenação óculo-manual. Além disso, esse sistema desempenha papel crucial no controle top-down sobre entradas sensoriais primárias, modulando a forma como estímulos externos são percebidos e integrados).
As áreas corticais de associação de alto nível não apenas recebem sinais feedforward, transmitidos dos níveis inferiores, como também enviam conexões retrógradas (predições). Essas predições top-down permitem impor contexto e restrições superiores sobre a informação sensorial ascendente, otimizando a inferência hierárquica.
Pesquisas recentes sugerem que o sistema atencional não constitui uma unidade única, mas pode ser subdividido em dois grandes subsistemas (Figura 3): a) Sistema de saliência: inclui o cíngulo anterior dorsal, os córtices frontoinsulares, a amígdala e o mesencéfalo ventral; b) Sistema atencional dorsal: inclui o córtex pré-frontal dorsolateral, os campos oculares frontais, o pré-frontal medial dorsal, o sulco intraparietal e o parietal superior.Ambos os sistemas apresentam uma relação inversa com a atividade do córtex cingulado posterior da DMN, mas não se mostram bem integrados entre si, sugerindo que sua coordenação depende do papel modulador da DMN.
Sob a perspectiva do modelo hierárquico helmholtziano, a DMN ocupa o topo da hierarquia cortical, exercendo controle sobre os sistemas de saliência e atenção. Cada sistema, por sua vez, busca reduzir a energia livre ou os erros de predição em níveis subordinados. Esse processo ocorre por meio de uma passagem recíproca de mensagens entre sistemas, levando à emergência de padrões auto-organizados de ativação.
Nesse contexto, a ativação do sistema atencional atua na supressão da excitação exógena, modulando a percepção do ambiente. A DMN, em posição hierárquica superior, exerce controle top-down sobre os sistemas atencionais e de saliência, explicando e suprimindo sua atividade. Assim, a DMN não apenas regula o equilíbrio entre foco interno e externo, mas também integra esses processos na manutenção da coesão cognitiva e afetiva, de acordo com o modelo de inferência preditiva.
OSCILAÇÕES NEURAIS
Durante algum tempo, houve dúvida se as oscilações BOLD espontâneas teriam origem neuronal ou seriam simplesmente devidas a processos fisiológicos não-neuronais. Pesquisas recentes esclareceram essa questão, mostrando que essas oscilações têm, de fato, origem neuronal. Evidências advêm de estudos combinando fMRI e registros intracranianos em macacos e humanos, que identificaram flutuações neuronais diretamente correlacionadas com oscilações BOLD.
As flutuações neuronais associadas às oscilações BOLD apresentam algumas características centrais: a) São coerentes entre hemisférios; b) Evidenciam-se em taxas de disparo multiunitárias e na potência gama de potenciais de campo local; c) As ativações BOLD evocadas por estímulos também se correlacionam positivamente com a potência gama. Esses achados fortalecem a ideia de que as oscilações BOLD são marcadores de dinâmicas de coerência neuronal.
A frequência gama tem papel fundamental por estar associada a atenção, integração de características (feature binding) e expectativa. O sinal BOLD reflete coerência cortical ligada ao gama, o que sugere sua associação com o processo secundário da cognição. A atividade gama em áreas corticais de alto nível pode suprimir frequências mais baixas em áreas de nível inferior. Flutuações gama em redes intrínsecas de larga escala indicam a minimização contínua da energia livre em níveis subordinados, o que poderia oferecer uma medida empírica do processo secundário (Carhart-Harris & Friston, 2010).
As oscilações estão presentes de forma ubíqua no cérebro e servem para acoplar populações neuronais distantes. Algumas frequências têm funções específicas: a) Gama (alta frequência): associada à síntese perceptiva e ao binding; b) Teta (mais lenta): estudada principalmente no hipocampo, onde se associa à memória espacial e à exploração; c) Acoplamento teta–gama: o teta fornece um referencial temporal para que computações rápidas, mediadas em gama, possam ocorrer de forma organizada (Carhart-Harris & Friston, 2010).
Um aspecto fundamental é que as oscilações espontâneas persistem em diferentes estados. A DMN continua a oscilar mesmo durante cognição ativa. O sistema de atenção dorsal continua a oscilar mesmo em repouso. Essa tonicidade sugere que as oscilações mantêm estruturas preparadas para inferir inputs externos, fornecendo suporte a um nível de codificação preditiva de fundo. Além disso, as oscilações espontâneas do BOLD podem ter amplitude tão grande quanto respostas evocadas por estímulos, variando junto com o comportamento. É relevante notar que grande parte do consumo energético cerebral é destinada justamente a essa atividade espontânea.
A leitura neuropsicanalítica dessa dinâmica permite alguns paralelos. A atividade espontânea da DMN pode ser interpretada como contenção da atividade endógena espontânea, em analogia ao conceito freudiano de repressão. A atividade espontânea do sistema de atenção dorsal relaciona-se ao monitoramento e supressão contínua de estímulos exógenos. Essa dinâmica é consistente com a visão helmholtzeana do cérebro como motor de inferência, continuamente gerando predições, que necessariamente envolvem o passado e o futuro. Assim, a dinâmica de “troca” entre DMN e sistemas pró-tarefa é vista como essencial para a cognição ativa e a consciência.
A conectividade funcional da DMN apresenta padrões de variação ao longo da vida e em diferentes condições clínicas: a) Aumenta no desenvolvimento. b) Diminui no envelhecimento; c) Reduz-se em pacientes com problemas de controle de impulso.
A ausência de desativação adequada da DMN também foi associada a manifestações clínicas: a) Erros cognitivos em indivíduos saudáveis; b) Sintomas negativos em esquizofrenia. c) Sintomas depressivos.
Em estados alterados de consciência, como sono, sedação e coma, a conectividade funcional da DMN permanece preservada. No entanto, a relação recíproca entre a DMN e redes anticorrelacionadas é alterada nesses estados, sugerindo uma reorganização da dinâmica funcional.
O processo secundário pode ser entendido em termos das redes intrínsecas de larga escala que atuam para predizer e suprimir excitação — ou seja, a energia livre no sentido helmholtzeano — em sistemas subordinados. Nesse quadro, a DMN desempenha papel central ao exercer efeito supressor sobre nós subcorticais e redes anticorrelacionadas. A conectividade funcional entre estruturas límbicas (como hipocampo e amígdala) e os principais nós da DMN durante o repouso reforça essa função integradora e regulatória.
Do ponto de vista evolutivo, os sistemas ligados ao ego/DMN parecem ter se desenvolvido para receber e controlar a excitação endógena, relacionada a processos mnêmicos e hedônicos, consolidando o paralelismo entre a teoria freudiana e a neurociência contemporânea.
FENOMENOLOGIA DO PROCESSO PRIMÁRIO
A fenomenologia do processo primário é associada a estados não ordinários de consciência. Freud partiu da observação fundamental de que existe, na mente, um modo arcaico de cognição, o qual, em condições normais de vigília, encontra-se efetivamente suprimido.
Esse processo primário é implementado por um sistema tanto ontogenética quanto filogeneticamente primitivo, designado por Freud como o “Inconsciente”, também referido como “Sistema Inconsciente” ou, em alemão, “Das Es” (“o Isso”). Em contraste, o ego é denominado “Das Ich” (“o Eu”) e o superego como “Das Überich” (“o Supereu”).
Embora o processo primário esteja associado principalmente ao id, Freud reconheceu que aspectos do ego também são inconscientes (no sentido descritivo), e que processos do id podem eventualmente tornar-se conscientes .
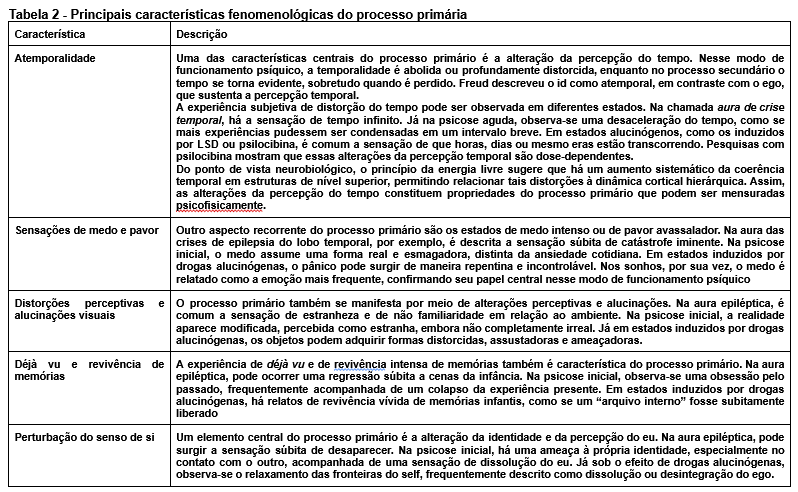
O processo primário apresenta um conjunto de características específicas, que se manifestam em estados não ordinários de consciência: a) Atemporalidade: b) Sensações de medo ou pavor; c)Distorções perceptivas e alucinações visuais; d) Déjà vu e revivência de memórias: e) Perturbação do senso de si. As principais características fenomenológicas do processo primário são sumarizadas na Tabela 2.